CRISPR: cómo se edita un gen
Durante mucho tiempo, cambiar un gen fue un asunto a ciegas. Se alteraba el ADN con agentes químicos o radiación y después había que buscar, entre miles de individuos, el que mostraba el rasgo deseado.
CRISPR cambió ese panorama porque separa dos tareas que antes iban juntas: reconocer una secuencia y cortarla. La primera la resuelve una molécula de ARN; la segunda, una proteína con actividad de tijera.
Este artículo explica de dónde salió el sistema, cómo se arma, qué ocurre después del corte y por qué el alcance del cambio depende del tipo de célula que se edita.
Cierra con dos casos resueltos, uno de diseño de la guía y otro de lectura de porcentajes, y con los errores que más se repiten en las preguntas del tema.
Qué significa editar un gen y por qué no es mutar al azar
Editar un gen es introducir un cambio deliberado en una secuencia conocida del ADN. El cambio puede inactivar el gen, reparar una versión alterada o sustituir unas pocas bases.
La mutación inducida funciona al revés. Se aplica un agente que rompe el ADN en muchos sitios y luego se seleccionan los individuos que presentan el rasgo buscado.
De esa diferencia salen dos ventajas concretas. Se necesitan menos generaciones para llegar al resultado y se sabe con certeza qué se modificó.
Antes de CRISPR ya existían herramientas capaces de cortar en un sitio elegido. Las nucleasas de dedos de zinc y las TALEN reconocían el blanco mediante proteínas diseñadas a medida.
Ese diseño proteico era costoso y lento. CRISPR lo reemplazó por un ARN corto, mucho más fácil de fabricar y de cambiar.
Tampoco conviene confundir la edición con las enzimas de restricción. Esas enzimas cortan secuencias fijas, casi siempre palindrómicas, y no se reprograman para apuntar a un gen cualquiera.
La diferencia es de programación. Una enzima de restricción reconoce lo que su estructura le permite; una guía de ARN reconoce lo que su secuencia le indica.
Esa programación por secuencia abrió dos caminos. Uno es apagar un gen para estudiar qué deja de ocurrir cuando falta; el otro es corregirlo con fines terapéuticos.
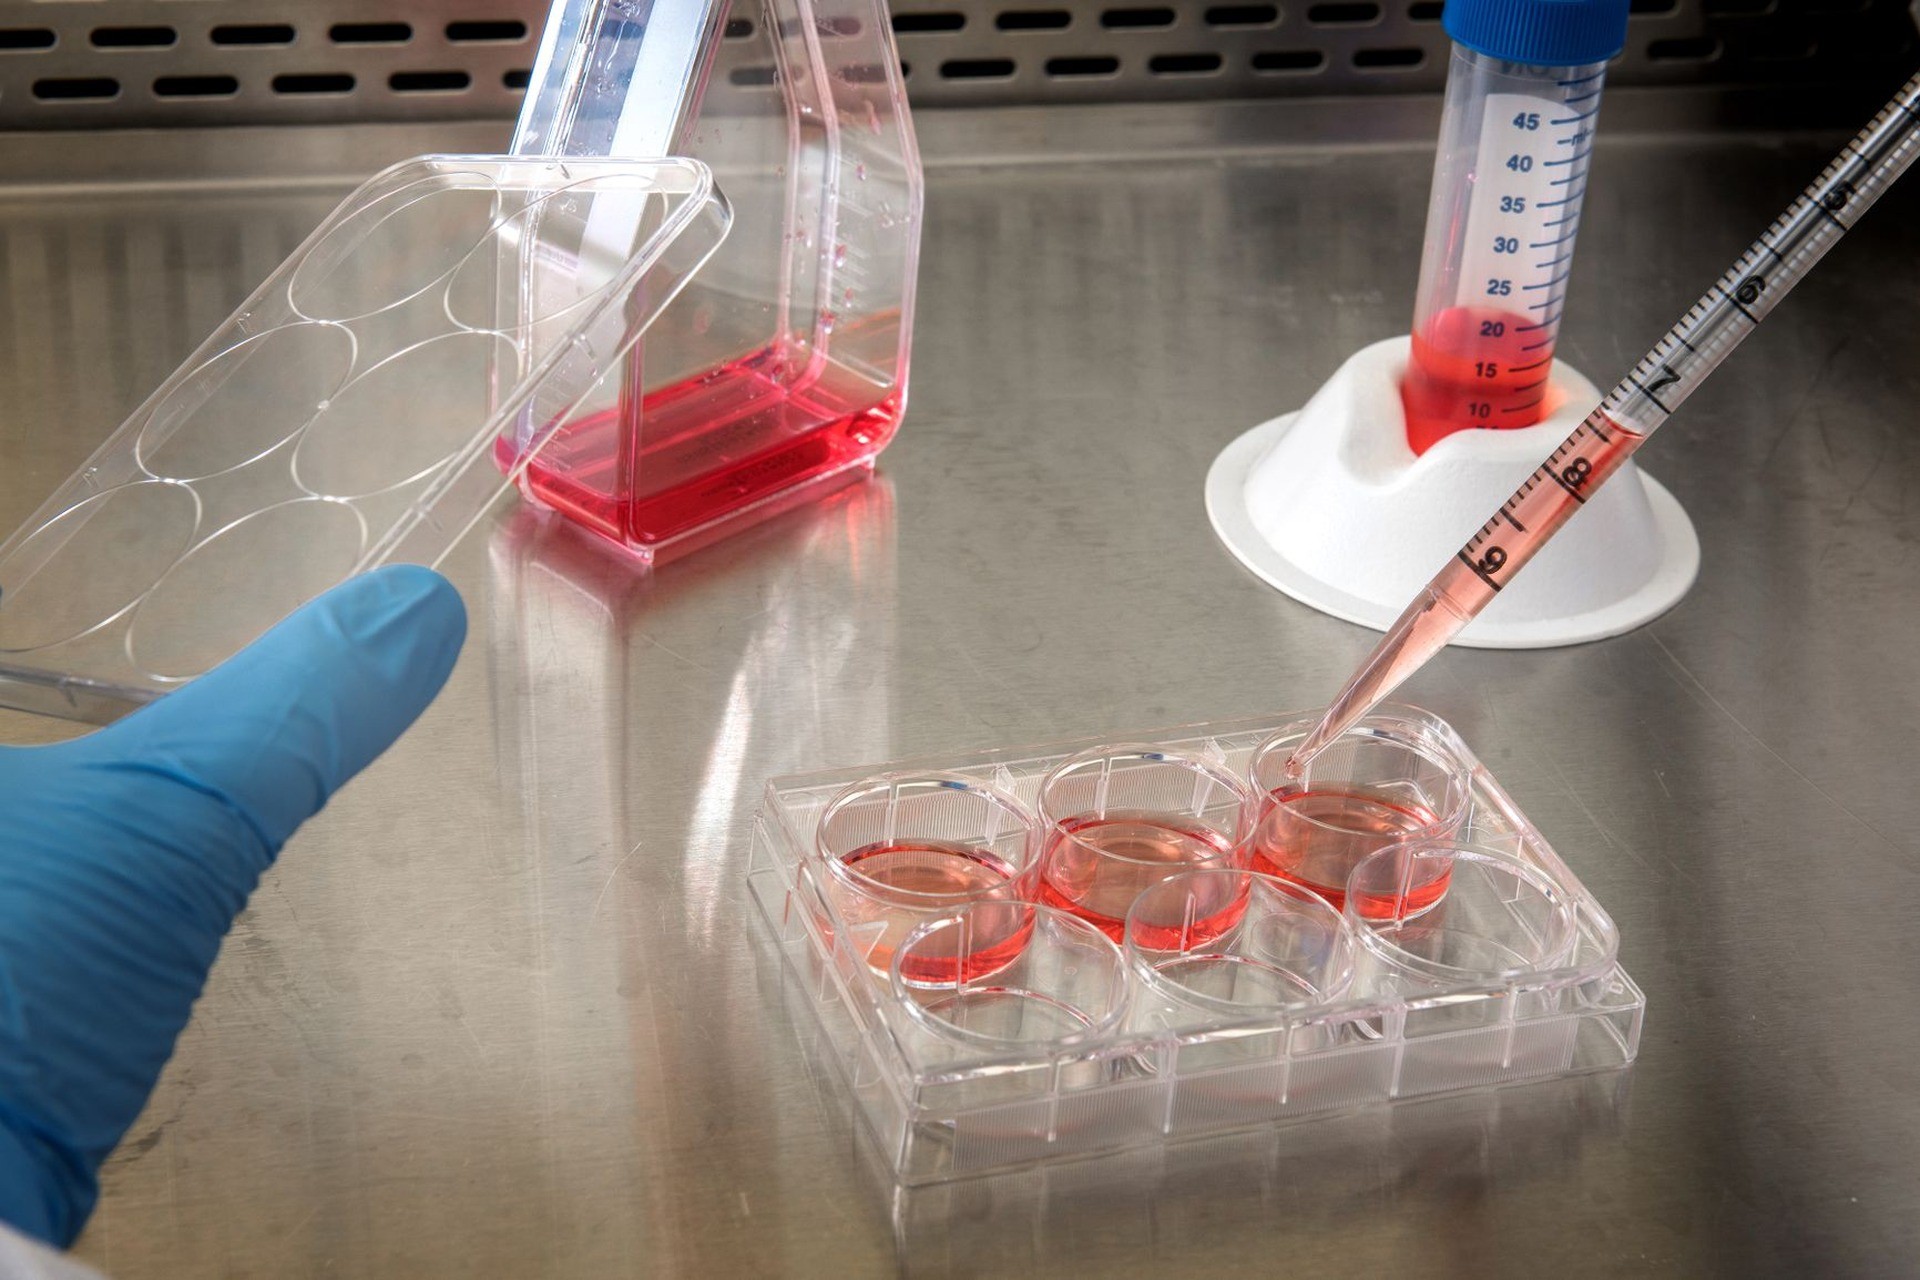
En el laboratorio, la edición también sirve para construir modelos celulares de una enfermedad. Se introduce la mutación que se estudia y se observa el efecto en un cultivo controlado.
El origen bacteriano: una memoria del ADN invasor
CRISPR no nació en un laboratorio de genética humana. Es un sistema de defensa que las bacterias usan contra los virus que las infectan.
Desde mediados de los años ochenta se observaron en genomas bacterianos unas repeticiones separadas por fragmentos cortos y distintos entre sí. El patrón llamó la atención, pero su función seguía sin explicación.
En 2005 se demostró que esos fragmentos, llamados espaciadores, provienen de material genético ajeno. Ese hallazgo cambió la interpretación del arreglo: parecía un archivo de encuentros previos.
Dos años después se comprobó el mecanismo. Una bacteria que incorpora el espaciador de un virus se vuelve resistente a ese virus concreto.
Así funciona la defensa adaptable. La bacteria guarda una copia del ADN invasor y la usa como registro del agresor.
Si el mismo virus reaparece, la bacteria transcribe ese fragmento como ARN y lo usa de guía. La maquinaria reconoce la secuencia y corta el ADN extraño.
El sistema tiene memoria y también especificidad. No reacciona contra cualquier virus, sino contra el que dejó su marca en el archivo.
Las piezas del sistema: la guía que reconoce y la nucleasa que corta
La primera pieza es un ARN corto, la guía, cuya secuencia es complementaria al ADN que se quiere modificar. La segunda es la proteína Cas9, una nucleasa que corta las dos hebras.
Las dos se unen y forman un complejo que recorre el ADN hasta encontrar su blanco. Allí el ARN se aparea con una hebra y la proteína corta.
La analogía útil es la de un buscador y unas tijeras. El ARN busca, la proteína corta y ninguna de las dos decide por su cuenta.
Cambiar las letras de la guía basta para apuntar a otro sitio del genoma. Ese detalle es lo que hace al sistema fácil de reprogramar.
Hay una condición adicional que suele preguntarse. La nucleasa no corta cualquier secuencia complementaria: necesita además un motivo corto llamado PAM junto al blanco.
En la Cas9 más usada, ese motivo es NGG, donde N puede ser cualquiera de las cuatro bases. Sin PAM, el complejo se une pero no corta.
La guía habitual ronda las veinte bases, una extensión que basta para reconocer un sitio único. Cuanto más corta es la coincidencia exigida, más probable resulta un corte fuera de lugar.
Si la guía no encuentra su secuencia, el complejo se desprende y el gen queda intacto. Por eso el diseño de la guía es el paso más delicado del experimento.
Cuando la coincidencia existe, el corte parte las dos hebras y deja una rotura de doble cadena. Esa rotura es una emergencia para la célula.
Después del corte: reparar sin molde o reparar con molde
La célula detecta la rotura y activa sus rutas de reparación. La herramienta ya hizo su trabajo; lo que siga depende de la maquinaria celular.
La vía más rápida une los extremos rotos sin plantilla. Es propensa a errores y suele perder o añadir unas pocas bases en la unión.
Ese pequeño cambio basta para inactivar el gen. Si se pierden o ganan bases, la secuencia se desarma y la proteína resultante queda inservible.
La segunda vía usa una molécula de ADN como patrón y copia el tramo desde ahí. Si se aporta un molde externo, esa vía permite restaurar la versión sana o introducir un cambio preciso.
El inconveniente es la frecuencia. La reparación con molde es mucho menos común y depende del tipo de célula y de su etapa del ciclo.
Por eso la misma tijera produce resultados distintos. En una célula que repara sin molde, el gen se apaga; en una que repara con molde, el gen se corrige.
| Vía | Cómo trabaja | Efecto sobre el gen |
|---|---|---|
| Unión sin molde | Pega los extremos y pierde o gana bases | Lo inactiva, porque la lectura se desarma |
| Reparación con molde | Copia el tramo desde una molécula patrón | Lo corrige o cambia una base precisa |
De la tabla se desprende la decisión experimental. Si el objetivo es apagar un gen, basta con cortar y dejar que la célula repare mal.
Si el objetivo es corregir, hay que sumar un molde y aceptar que el éxito será menor. Esa asimetría explica por qué las terapias de corrección avanzan más despacio.
También explica por qué muchas terapias apagan un gen en lugar de arreglarlo. Apagar es más simple: basta un corte y una reparación descuidada.
Edición somática y edición heredable: dónde está la frontera
El alcance de una edición depende del tipo de célula que se modifica. No es lo mismo cambiar una célula de la médula que cambiar un embrión de pocas células.
La edición somática actúa sobre células del cuerpo que no forman gametos. El cambio se queda en el paciente tratado y no pasa a sus hijos.
La edición de la línea germinal toca gametos, células precursoras o embriones tempranos. El cambio se transmite a todas las células del individuo y a su descendencia.
| Aspecto | Somática | De la línea germinal |
|---|---|---|
| Qué células se tocan | Del cuerpo, como médula ósea o retina | Gametos, precursores o embriones tempranos |
| A quién alcanza | Solo a la persona tratada | Al individuo y a sus descendientes |
| Se hereda | No | Sí |
| Cómo se regula | Como cualquier tratamiento nuevo | Prohibida en la mayoría de los países que legislaron |
La somática se evalúa con ensayos clínicos, dosis, efectos adversos y seguimiento. La heredable, en cambio, modifica a alguien que todavía no puede decidir.
Los datos disponibles muestran un acuerdo amplio. De 106 países estudiados, 75 prohíben la edición heredable con fines reproductivos y ninguno la permite expresamente.
De esos 75, setenta la prohíben de forma absoluta y cinco admiten posibles excepciones. La recomendación internacional pide no aplicarla mientras falten pruebas de seguridad y un marco de gobernanza.
Ese acuerdo no es solo una declaración de principios. El Convenio de Oviedo, un tratado vinculante firmado por 29 países europeos, prohíbe la edición heredable.
Aplicaciones y límites: de la retina al campo de cultivo
La anemia falciforme fue el primer blanco aprobado. Un solo cambio de base deforma la hemoglobina y los glóbulos rojos obstruyen los vasos.
La estrategia no corrige la mutación. Se edita una región reguladora del gen BCL11A en células madre de la sangre del propio paciente para reactivar la hemoglobina fetal.
En 2023 se aprobaron las primeras terapias de edición para pacientes de 12 años o más. En el estudio principal se trataron 44 pacientes y 31 tenían seguimiento suficiente para evaluarse.
La indicación se amplió después a niños desde los 2 años y también cubre la talasemia dependiente de transfusiones. Es el primer tratamiento de este tipo aprobado para esa edad.
De esos 31, veintinueve quedaron libres de crisis graves durante al menos doce meses seguidos. El cálculo da 93,5 % y conviene recordar que el denominador son los evaluables, no los tratados.
En la retina el problema es distinto. Una mutación del gen CEP290 añade un tramo que no debería estar en el mensaje y la proteína resultante queda defectuosa.
El complejo se inyecta debajo de la retina del ojo con peor visión y corta la región afectada. En el estudio inicial participaron 14 personas: 12 adultos y 2 niños.
Nueve de los 14 mejoraron en al menos uno de los resultados medidos, lo que equivale al 64 %. No se registraron efectos adversos graves relacionados con el tratamiento.
La misma capacidad de reconocer una secuencia tiene un uso que no edita nada. Ciertas nucleasas, como las Cas12 y Cas13, se activan al encontrar su blanco y cortan cualquier molécula cercana.
Si se añaden sondas marcadas, ese corte genera una señal. El sistema resulta barato y no exige instrumentos mayores, aunque el procesamiento de la muestra y la estabilidad de los reactivos siguen siendo obstáculos.
En las plantas la lógica es la misma y el resultado suele ser un cambio pequeño. Se han editado variedades de trigo más resistentes al oídio y de arroz resistentes al añublo bacteriano.
Para la regulación importa un detalle. Muchas de esas variedades no llevan ADN de otra especie, porque el cambio se hizo dentro de un gen que ya existía.
Los límites también son claros. La guía puede tolerar alguna letra distinta y cortar en un sitio parecido: son los efectos fuera del objetivo.
En un estudio con ratones, una guía diseñada a propósito para ser promiscua produjo mutaciones fuera del blanco. Guías bien diseñadas, en cambio, editaron el sitio buscado sin cambios detectables en todo el genoma.
Que no se detecten no significa que no existan. En terapia se usa la secuenciación amplia para buscarlos, y el resultado negativo solo indica que los métodos no los encontraron.
El mosaicismo es otro límite. Cuando se edita un embrión de pocas células, el corte y la reparación no ocurren igual en todas, y el individuo resulta con una mezcla.
Un estudio en embriones humanos tempranos encontró resultados no previstos en cerca del 16 % de las células analizadas. Esos cambios abarcaban regiones de 4 a 20 kilobases.
Queda la entrega, que es la mitad del problema. Fuera del cuerpo las células se editan en el laboratorio y se trasplantan; dentro del cuerpo, el complejo puede degradarse antes de llegar o no alcanzar el tejido elegido.
La entrega dirigida con nanopartículas es una de las líneas de investigación abiertas. El objetivo es que el sistema llegue solo al órgano que lo necesita y en la dosis correcta.
Ninguno de esos límites invalida la técnica. Marcan dónde está la frontera entre lo que se puede hacer hoy y lo que todavía se investiga.
Dos casos resueltos y los errores que más aparecen
El primer caso trabaja con la secuencia; el segundo, con el porcentaje de un ensayo. Los dos se resuelven con lápiz y papel.
Caso 1: escribir la guía que reconoce un sitio
Situación: un laboratorio quiere cortar una región cuya hebra molde se lee G C A T G C C T. Hay que escribir la guía de ARN correspondiente.
Se aplican las reglas de apareamiento: la G con la C, la C con la G, la A con la T y la T con la A.
- Paso 1. Se escribe la hebra complementaria base por base, empezando por la G inicial, que pide una C.
- Paso 2. La secuencia complementaria queda C G T A C G G A.
- Paso 3. En el ARN no existe timina, así que cada T se escribe como U.
- Paso 4. La guía queda C G U A C G G A.
- Paso 5. Se revisa el apareamiento posición por posición y las ocho coinciden.
- Paso 6. Si la primera base del blanco cambiara de G a A, la guía encontraría una letra distinta y el apareamiento fallaría.
- Paso 7. Sin apareamiento completo no hay corte, y la mutación seguiría igual.
Respuesta: la guía es C G U A C G G A, y un cambio en la primera base del sitio impide que el complejo lo reconozca.
Caso 2: el porcentaje de éxito de un ensayo
Situación: en el estudio de anemia falciforme se trataron 44 pacientes. Solo 31 tenían seguimiento suficiente para evaluar el resultado, y de ellos 29 lograron el objetivo.
Hay que calcular el porcentaje de éxito y explicar por qué no se divide entre los 44.
- Paso 1. Se fija el denominador correcto: los 31 pacientes evaluables.
- Paso 2. El numerador son los 29 que alcanzaron el resultado.
- Paso 3. La división 29 entre 31 da 0,9355.
- Paso 4. Multiplicado por cien, el resultado es 93,5 %.
- Paso 5. La cuenta equivocada sería 29 entre 44, que da 0,659 y un 65,9 %.
- Paso 6. Los 13 restantes no fallaron: su seguimiento era todavía corto.
Respuesta: el éxito es del 93,5 % sobre los pacientes evaluables; usar los 44 tratados daría un 65,9 % que no refleja el resultado del ensayo.
Al responder, ubicá primero el nivel del cambio. Si el enunciado habla de un paciente, es somática; si habla de descendientes, es germinal.
Si el enunciado describe una tijera que corta donde se le indique, la respuesta pasa por la guía de ARN y no por una enzima de restricción.
Conclusión
CRISPR edita el genoma porque separa el reconocimiento del corte. Un ARN corto encuentra la secuencia y una proteína la parte en ese punto.
El sistema viene de las bacterias, que lo usan como archivo de los virus que las atacaron. La ciencia solo aprendió a cambiar la guía para apuntar a un gen propio.
Después del corte decide la célula. Sin molde, el gen queda inactivo; con molde, puede corregirse o cambiarse con precisión.
La frontera más importante no es técnica sino de alcance. Lo somático se queda en el paciente y lo germinal pasa a sus descendientes, y por eso la mayoría de las legislaciones lo prohíbe.
Con esas cuatro ideas —guía, tijera, reparación y alcance— se responden casi todas las preguntas del tema.
Referencias Bibliográficas
- Administración de Alimentos y Medicamentos de los Estados Unidos. (2023). FDA approves first gene therapies to treat patients with sickle cell disease. https://www.fda.gov/news-events/press-announcements/fda-approves-first-gene-therapies-treat-patients-sickle-cell-disease
- Administración de Alimentos y Medicamentos de los Estados Unidos. (2026). FDA approves first gene therapy for young children with sickle cell disease. https://www.fda.gov/news-events/press-announcements/fda-approves-first-gene-therapy-young-children-sickle-cell-disease
- Akcakaya, P., Bobbin, M. L., Guo, J. A., Malagon-Lopez, J., Clement, K., Garcia, S. P., Fellows, M. D., Porritt, M. J., Firth, M. A., Carreras, A., Baccega, T., Seeliger, F., Bjursell, M., Tsai, S. Q., Nguyen, N. T., Nitsch, R., Mayr, L. M., Pinello, L., Bohlooly-Y, M., … Joung, J. K. (2018). In vivo CRISPR editing with no detectable genome-wide off-target mutations. Nature, 561(7723), 416-419. https://pmc.ncbi.nlm.nih.gov/articles/PMC6194229/
- Alanis-Lobato, G., Zohren, J., McCarthy, A., Fogarty, N. M. E., Kubikova, N., Hardman, E., Greco, M., Wells, D., Turner, J. M. A. y Niakan, K. K. (2021). Frequent loss of heterozygosity in CRISPR-Cas9-edited early human embryos. Proceedings of the National Academy of Sciences, 118(22), e2004832117. https://pmc.ncbi.nlm.nih.gov/articles/PMC8179174/
- Ghouneimy, A., Mahas, A., Marsic, T., Aman, R. y Mahfouz, M. (2023). CRISPR-based diagnostics: Challenges and potential solutions toward point-of-care applications. ACS Synthetic Biology, 12(1), 1-16. https://pmc.ncbi.nlm.nih.gov/articles/PMC9872163/
- Hasson, K. (2020). Assessing the global policy landscape for human germline and heritable genome editing. Center for Genetics and Society. https://geneticsandsociety.org/biopolitical-times/assessing-global-policy-landscape-human-germline-and-heritable-genome-editing
- Instituto Nacional de Investigación del Genoma Humano. (s. f.). How does genome editing work? https://www.genome.gov/about-genomics/policy-issues/Genome-Editing/How-genome-editing-works
- Newsom, S., Parameshwaran, H. P., Martin, L. y Rajan, R. (2021). The CRISPR-Cas mechanism for adaptive immunity and alternate bacterial functions fuels diverse biotechnologies. Frontiers in Cellular and Infection Microbiology, 10, 619763. https://pmc.ncbi.nlm.nih.gov/articles/PMC7876343/
- Organización Mundial de la Salud. (2021). WHO issues new recommendations on human genome editing for the advancement of public health. https://www.who.int/news/item/12-07-2021-who-issues-new-recommendations-on-human-genome-editing-for-the-advancement-of-public-health
- Pierce, E. A., Aleman, T. S., Jayasundera, K. T., Ashimatey, B. S., Kim, K., Rashid, A., Jaskolka, M. C., Myers, R. L., Lam, B. L., Bailey, S. T., Comander, J. I., Lauer, A. K., Maguire, A. M. y Pennesi, M. E. (2024). Gene editing for CEP290-associated retinal degeneration. New England Journal of Medicine, 390(21), 1972-1984. https://pmc.ncbi.nlm.nih.gov/articles/PMC11389875/
- Zhu, H., Li, C. y Gao, C. (2020). Applications of CRISPR-Cas in agriculture and plant biotechnology. Nature Reviews Molecular Cell Biology, 21(11), 661-677. https://www.nature.com/articles/s41580-020-00288-9
Para seguir estudiando: Las enzimas de restricción y el ADN recombinante y La bioética y los datos genéticos.